

В городе Дарвин на севере Австралии расположено государственное кернохранилище. В нем под простым навесом на металлических стеллажах хранятся тысячи узких деревянных и пластиковых ящиков. Внутри лежат длинные каменные цилиндры — керны, извлеченные из разведочных скважин глубиной в сотни метров.
В 1970-1980-х годах горнорудные компании вели здесь масштабные поиски месторождений цинка, свинца и меди. Геологи бурили осадочный бассейн Макартур, планомерно извлекая образцы пород на поверхность. Металлы горняки в итоге нашли в других местах, а извлеченный каменный материал остался на государственном хранении.
Первый вдох, вольная интерпретация
Автор: ИИ Copilot Designer//DALL·E 3 Источник: www.bing.com
Среди этих цилиндров находились сотни метров серого аргиллита. Аргиллит — это осадочная горная порода, которая возникла из глины и тонкого ила, оседавшего на дне древнего моря. Полтора миллиарда лет назад это море покрывало значительную часть современной Северной территории Австралии. С течением сотен миллионов лет пласты донного ила под давлением вышележащих слоев и высокой температуры потеряли воду, спрессовались и превратились в твердый камень.
Геологи, искавшие цветные металлы, не обращали внимания на внутреннюю структуру этих аргиллитов. Для горной промышленности это была пустая вмещающая порода. Однако именно в этих образцах сохранились минерализованные остатки древнейших одноклеточных организмов планеты. Новая научная работа международной группы исследователей, опубликованная в журнале Nature, показала: эти пласты содержат точный ответ на вопрос о том, какие условия внешней среды потребовались для появления первых сложных форм жизни на Земле.
Два типа клеток: фундаментальное различие
Чтобы понять суть открытия, необходимо разделить все живые организмы Земли на две группы. Это разделение фундаментальнее, чем разница между животными и растениями.
Первая группа — прокариоты. К ним относятся бактерии и археи. Это микроскопические одноклеточные организмы с предельно простым внутренним строением. Внутри бактериальной клетки нет внутренних перегородок из мембран. Ее генетический материал — молекула ДНК — свободно лежит непосредственно в клеточной жидкости (цитоплазме). У бактерий нет ядра, нет внутренних органов клетки (органелл) и нет жесткого белкового каркаса, который мог бы поддерживать сложную форму тела.
Вторая группа — эукариоты. К ним относятся все остальные живые существа: амебы, водоросли, грибы, деревья, насекомые и человек. Клетка эукариот устроена несоизмеримо сложнее.
Главные отличия эукариот от бактерий:
- 1.Обособленное ядро. Вся генетическая информация клетки окружена двойным слоем мембраны с регулируемыми порами, которые контролируют доступ к генам.
- 2.Внутреннее разделение на отсеки. Внутри клетки есть отдельные изолированные области для разных химических реакций. Это позволяет одновременно проводить процессы, которые иначе мешали бы друг другу.
- 3.Цитоскелет. Сложная сеть из белковых микротрубок и нитей, которая пронизывает всю клетку. Цитоскелет позволяет менять форму, передвигаться, захватывать твердые частицы пищи и перемещать внутренние структуры.
- 4.Митохондрии. Специальные структуры внутри клетки, единственная задача которых — производство химической энергии.
По генетическим данным ученые давно установили: эукариоты произошли в результате объединения двух разных прокариот. Крупная клетка (архея) поглотила более мелкую бактерию, но не переварила ее. Поглощенная бактерия осталась жить внутри клетки-хозяина и со временем превратилась в митохондрию.
Это событие стало отправной точкой для всей последующей эволюции сложных организмов. Однако в научном сообществе долгие годы продолжался спор о том, в каких именно химических условиях окружающей среды происходил этот переход.
Геометрический барьер: почему бактерии не могут стать большими
У бактерий есть жесткое физическое ограничение, которое не позволяет им вырастать до крупных размеров и усложняться. Это ограничение связано с геометрией и процессами выработки энергии.
Для всех жизненных процессов клетке требуется молекула аденозинтрифосфата (АТФ). АТФ — это универсальное химическое вещество, при расщеплении которого выделяется энергия, необходимая для сборки белков, копирования ДНК и поддержания жизнедеятельности.
Бактерии синтезируют АТФ с помощью специальных белковых комплексов, встроенных в их внешнюю оболочку (плазматическую мембрану). Мембрана работает как преграда: клетка выкачивает наружу протоны, создавая разность зарядов между внутренней и внешней средой. Затем протоны возвращаются обратно через встроенные белковые молекулы, которые за счет этого движения собирают АТФ.
Здесь вступает в силу простое математическое правило: соотношение площади поверхности к объему.
Когда клетка увеличивается в размере, ее объем растет гораздо быстрее, чем площадь ее оболочки:
- Объем клетки зависит от радиуса в третьей степени (кубическая зависимость).
- Площадь наружной мембраны зависит от радиуса во второй степени (квадратичная зависимость).
Если бактерия увеличит свой диаметр в 10 раз, площадь ее мембраны вырастет в 100 раз, а внутренний объем — в 1000 раз. Это означает, что клетке потребуется в 1000 раз больше белков, ферментов и энергии для поддержания жизни, а площадь мембраны, которая вырабатывает АТФ, отстанет в росте в десять раз. Клетка столкнется с критической нехваткой энергии на единицу собственного объема. Бактерия просто не сможет выработать достаточно АТФ на своей поверхности, чтобы обеспечить потребности увеличившейся цитоплазмы.
Эукариоты решили эту физическую проблему за счет митохондрий. Вместо того чтобы производить энергию на внешней мембране, они перенесли эти процессы внутрь. Внутри одной сложной клетки могут находиться сотни и тысячи митохондрий. Каждая митохондрия имеет множество собственных внутренних складок мембраны, на которых идет синтез АТФ. Если эукариотическая клетка увеличивается в объеме, она просто увеличивает количество митохондрий внутри себя.
Геометрический барьер был снят. Но возник вопрос о том, какое химическое сырье требовалось митохондриям для работы.
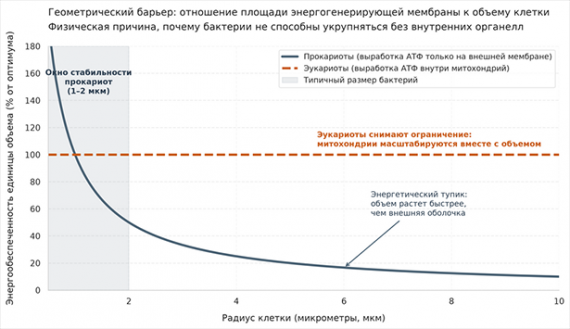
Зависимость энергообеспеченности клетки от ее размера. Бактерии синтезируют энергию только на внешней оболочке. При росте клетки объем увеличивается гораздо быстрее, чем площадь ее поверхности, из-за чего бактерия сталкивается с резким дефицитом энергии (синяя кривая). Сложные клетки преодолели этот барьер с помощью митохондрий: вынос производства энергии внутрь клетки позволяет поддерживать стабильный уровень АТФ при любом размере (оранжевая пунктирная линия). Автор: Ruby_Rougarou
Кислородный спор: топливо или второстепенный фактор
Обычный способ выработки энергии с участием кислорода называется аэробным клеточным дыханием. Окисление одной молекулы глюкозы кислородом позволяет клетке синтезировать около 30-32 молекул АТФ.
Если же клетка расщепляет питательные вещества без участия кислорода (например, путем анаэробного брожения или гликолиза), она получает всего 2 молекулы АТФ на одну молекулу глюкозы. Разница в эффективности составляет примерно шестнадцать раз.
Поэтому долгие годы в биологии считалось очевидным: именно появление свободного кислорода в атмосфере и воде древней Земли создало условия для возникновения эукариот. Клеткам требовался высокий выход энергии, чтобы содержать сложный внутренний аппарат, и кислород давал такую возможность.
Однако в последние двадцать лет эта позиция подверглась серьезной критике. Причиной стали два фактора.
Первый фактор — геологический. Исследования древних осадочных пород показали, что атмосфера и океаны Земли в протерозойскую эру (в период от 1,8 до 0,8 миллиарда лет назад) содержали крайне мало кислорода. Если сегодня в атмосфере содержится около 21% кислорода, то тогда его уровень не превышал сотых долей процента от современного. Водная толща океанов была почти полностью лишена растворенного O₂. Океан был наполнен растворенным двухвалентным железом или сероводородом. Кислород присутствовал лишь в самых верхних слоях воды у поверхности, где его вырабатывали фотосинтезирующие цианобактерии.
Второй фактор — биологический. Ученые открыли множество видов современных одноклеточных эукариот, которые постоянно живут в условиях полного отсутствия кислорода: в глубоком морском иле, на дне бескислородных озер или внутри пищеварительного тракта животных. У многих из этих организмов митохондрии сильно видоизменились (превратились в гидрогеносомы или митосомы) и производят энергию бескислородным путем.
На стыке этих двух фактов возникло сомнение: если древний океан был практически бескислородным, а одноклеточные эукариоты способны жить без кислорода, то был ли кислород обязательным условием для их появления?
Появилась гипотеза, утверждавшая, что эукариоты возникли и долгое время развивались в бескислородной среде, используя анаэробные химические реакции, а кислородное дыхание освоили значительно позже.
Чтобы разрешить это фундаментальное противоречие, требовалось найти прямое доказательство: сопоставить остатки древнейших эукариот с составом воды, в которой они жили и погибали.
Анализ двенадцати тысяч микроскопических ископаемых
Именно эту работу проделали авторы статьи в Nature, использовав керны аргиллитов из Дарвина.
Возраст изученных слоев составил от 1,75 до 1,4 миллиарда лет. Это критически важный интервал земной истории: именно к этому времени относятся самые ранние достоверные находки эукариотических организмов на нашей планете.
Исследование состояло из двух независимых параллельных этапов: палеонтологического и геохимического.
1. Извлечение древних клеток
Ученые взяли образцы керна через регулярные интервалы глубин. Каждый образец очистили от поверхностных загрязнений, раскололи и измельчили в мелкий порошок.
Чтобы отделить микроскопические остатки организмов от камня, исследователи применили метод кислотного растворения. Порошок обработали соляной и концентрированной плавиковой (фтороводородной) кислотами. Минералы, слагающие глину и ил — силикаты и карбонаты, — полностью растворились в кислоте.
Оболочки клеток состоят из стойких органических полимеров, на которые эти кислоты не действуют. В результате растворения породы на дне лабораторных емкостей остался тонкий органический осадок.
Этот осадок нанесли на предметные стекла и изучили под оптическими и электронными микроскопами. Всего исследователи извлекли и классифицировали более 12 000 отдельных микрофоссилий (микроскопических ископаемых остатков).
Отличить древнюю бактерию от сложной клетки эукариота палеонтологам позволяют строгие морфологические признаки:
- Размер. Бактерии тех эпох обычно имели диаметр от 1 до 5 микрометров. Ископаемые эукариоты достигали десятков и сотен микрометров.
- Сложная оболочка. Клетки эукариот обладали плотными многослойными стенками, устойчивыми к механическому сжатию.
- Выросты и скульптура поверхности. На оболочках древних эукариот видны радиальные шипы, концентрические складки, отверстия с воротничками для выхода содержимого клетки. Ничего подобного бактерии формировать не способны, так как у них нет цитоскелета для построения таких структур.
2. Химический анализ древней морской воды
Параллельно из тех же самых кусочков породы геохимики отобрали пробы для анализа химического состава среды осадконакопления.
Когда частицы ила оседают на морское дно, они связывают и консервируют химические элементы из окружающей воды. Определить наличие кислорода в древнем море ученым помог анализ соединений железа.
В присутствии свободного кислорода железо быстро окисляется, образуя нерастворимые оксиды (трехвалентное железо). В бескислородной воде железо остается растворенным (двухвалентным) либо при наличии серы связывается в сульфид железа (пирит). Измеряя соотношение разных форм железа и содержание чувствительных к кислороду металлов (таких как молибден и уран), исследователи смогли точно определить: содержал ли придонный слой воды кислород в момент накопления конкретного слоя ила или вода была лишена O₂.
Результаты: строгое разделение по химическому признаку
Когда авторы сопоставили биологические находки с химическими данными, результаты распределились без каких-либо промежуточных исключений.
В образцах пород, которые сформировались на бескислородных участках морского дна, ученые обнаружили только остатки простых прокариот. Ни одной сложной клетки в этих слоях найдено не было. Бактерии населяли всю водную толщу древнего бассейна независимо от химических условий.
Останки эукариот обнаружились исключительно в тех пластах, где геохимический анализ показал присутствие растворенного кислорода. При этом эукариоты обитали в разных экологических зонах древнего бассейна:
- в прибрежных мелководных лагунах, где волны и ветер перемешивали воду с атмосферой;
- в зоне приливно-отливных отмелей;
- на участках открытого морского шельфа, куда проникал свет и где кислород вырабатывали планктонные фотосинтетики.
Везде, где вода содержала хотя бы небольшое количество растворенного кислорода, присутствовали эукариоты со сложными клеточными оболочками. Как только уровень кислорода по геохимическим маркерам падал до нуля, эукариоты полностью исчезали из геологической летописи.
Это соотношение подтвердилось на всей выборке кернов в диапазоне времени более трехсот миллионов лет.
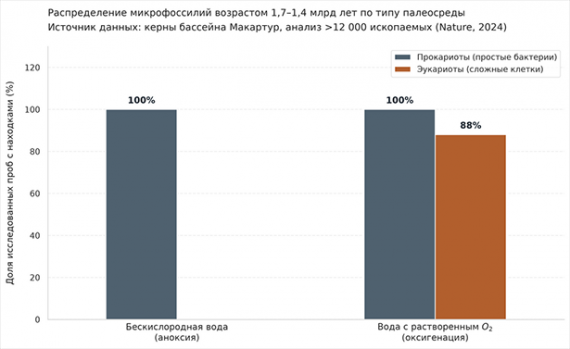
Распределение микроорганизмов в зависимости от наличия кислорода в древнем море. В осадках бескислородных зон (аноксия) эукариоты отсутствуют полностью — обнаружены только простые прокариоты. Сложные эукариотические клетки встречаются исключительно в пластах, где геохимия подтверждает присутствие растворенного O2. График построен по результатам анализа более 12 000 микроископаемых возрастом 1,7-1,4 млрд лет из бассейна Макартур (Австралия). Автор: Ruby_Rougarou
Энергетическая цена сложности: почему анаэробиоз не подошел
Полученные данные позволяют однозначно ответить на вопрос, почему эукариоты не могли полноценно развиваться и усложняться в бескислородной среде.
Вся биологическая сложность эукариотической клетки требует постоянного расхода огромного количества энергии в форме АТФ. Это не разовые затраты на строительство клетки, а непрерывный процесс поддержания ее функциональности.
Куда сложная клетка расходует энергию:
- 1.Динамическая работа цитоскелета. Белковые микротрубочки внутри клетки постоянно собираются с одного конца и разбираются с другого. Этот процесс требует непрерывного расщепления АТФ. Без работающего цитоскелета эукариот теряет форму и способность перемещать вещества внутри своего объема.
- 2.Внутриклеточный транспорт. В крупной клетке питательные вещества не могут перемещаться простой диффузией (это происходило бы слишком медленно). Специальные транспортные белки буквально шагают по микротрубкам цитоскелета, перенося органеллы и пузырьки с ферментами от ядра к наружной мембране и обратно. Каждый шаг такого белка требует молекулы АТФ.
- 3.Обслуживание генетического аппарата. Геном эукариот в сотни и тысячи раз длиннее генома бактерий. Чтобы регулярно считывать с него информацию, упаковывать ДНК в хромосомы и исправлять спонтанные ошибки в молекулярной цепочке, клетке требуется колоссальный объем химической энергии.
- 4.Утилизация отходов. Сложные белковые комплексы внутри клетки постоянно повреждаются. Клетка должна разрушать их в специальных отсеках и синтезировать новые белки взамен дефектных.
При бескислородном расщеплении органических веществ клетка получает лишь 2 молекулы АТФ на молекулу глюкозы. Этого хватает прокариотам: их внутренний объем микроскопичен, ДНК мала, а цитоскелет отсутствует. Бактерия может существовать на скудный энергетический доход, потому что у нее нет внутренних систем, требующих постоянного обслуживания.
Но для крупной клетки с ядром, системой мембран и транспортными путями двух молекул АТФ категорически недостаточно. Ее базовые затраты на то, чтобы просто не разрушиться под действием физических и химических факторов среды, превышают возможности анаэробного метаболизма.
Только кислородное окисление, дающее более тридцати молекул АТФ, позволило клеткам покрыть эти расходы. Кислород сделал усложнение строения клетки энергетически возможным.
Что касается современных одноклеточных эукариот, живущих без кислорода, то новое исследование подтверждает давно высказывавшуюся теорию: они не являются древними реликтами первоначальной бескислородной жизни. Это специализированные потомки более поздних эукариот, которые изначально обладали митохондриями и кислородным дыханием. Позже, в процессе приспособления к специфическим донным илам и паразитическому образу жизни, они упростили свой обмен веществ и утратили полноценные митохондрии. Это была вторичная адаптация к узким нишам, а не исходное состояние сложной жизни.
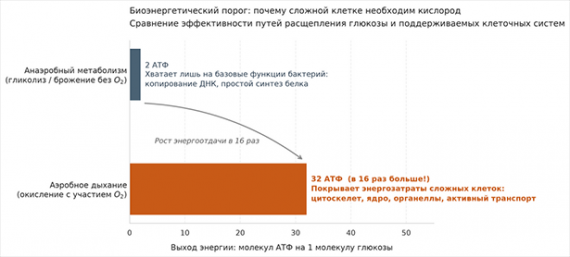
Сравнение энергетического выхода бескислородного и кислородного метаболизма. Бескислородный гликолиз обеспечивает синтез лишь 2 молекул АТФ, чего достаточно только для обслуживания микроскопической клетки бактерии. Кислородное дыхание митохондрий вырабатывает 32 молекулы АТФ — именно этот 16-кратный прирост энергии позволил эукариотам содержать ядро, крупный геном, цитоскелет и систему внутриклеточного транспорта. Автор: Ruby_Rougarou
Значение для земной истории и поиска жизни на других планетах
Результаты анализа австралийских аргиллитов меняют понимание двух важнейших научных направлений.
Эволюция на Земле
Период между 1,8 и 0,8 миллиарда лет назад геологи долгое время называли «скучным миллиардом». Считалось, что на протяжении этой гигантской эпохи на планете ничего принципиального не происходило: концентрация кислорода не росла, климат оставался монотонным, а биологическая эволюция практически остановилась.
Исследование показывает, что эта эпоха не была застоем. Это было время жесткой локальной конкуренции эукариот за участки морского дна, обогащенные кислородом. Эукариоты не могли захватить весь океан, поскольку большая часть толщи воды оставалась бескислородной. Сложные организмы жили небольшими очагами вдоль береговых линий и на освещенных мелководьях.
В этих зонах шли постоянные эволюционные пробы: совершенствовалось строение защитных оболочек, отрабатывались механизмы межклеточного взаимодействия и химической сигнализации. Когда значительно позже — около 600-700 миллионов лет назад — геологические процессы привели ко второму масштабному насыщению океана кислородом, эукариоты уже обладали всеми биологическими инструментами, чтобы мгновенно заселить водные толщи и дать начало первым многоклеточным животным.
Астробиология
Полученные выводы имеют прямое отношение к поиску жизни за пределами Земли.
Простая бактериальная жизнь требует минимума условий: наличия жидкого растворителя (воды), источника органических или неорганических молекул и небольшого температурного диапазона. Бактерии возникли на Земле почти сразу после того, как затвердела ее кора и появилась жидкая вода (около 3,8-4 миллиардов лет назад). Исходя из этого, астробиологи предполагают, что прокариотическая жизнь может быть достаточно распространенным явлением во Вселенной: ее ищут в подледных океанах спутников Юпитера и Сатурна (Европы и Энцелада), а также в грунте Марса.
Однако переход от простой одноклеточной бактерии к сложным формам жизни — это не закономерный автоматический шаг, который жизнь делает со временем. Для этого шага на планете должен сложиться стабильный планетарный геохимический цикл, способный длительное время насыщать открытые водоемы мощным окислителем — свободным кислородом.
Если на экзопланете не возник оксигенный фотосинтез и в ее атмосфере нет свободного кислорода, жизнь на ней с высокой долей вероятности останется на бактериальном уровне навсегда. Сложная внутренняя организация клетки требует слишком много энергии, чтобы возникнуть в бескислородном мире. Окаменелости из Северной территории Австралии показали: доступ к кислороду был не второстепенным фактором, а строгим химическим порогом, без преодоления которого появление сложных живых организмов оказалось невозможным.
Пост опубликован в блогах iXBT.com
